기후변화 대응 생물다양성 보전을 위한 국내 포유류 기반 생물기후 생태계 회복력 지수(BERI) 산출

Abstract
Climate change threatens global biodiversity, and quantitative assessment of ecosystem resilience is essential for climate-adaptive conservation. The Bioclimatic Ecosystem Resilience Index (BERI), a component indicator of Target 8 of the Kunming-Montreal Global Biodiversity Framework (KM-GBF), quantifies the capacity of terrestrial ecosystems to retain biodiversity under climate change by integrating habitat condition, connectivity, and compositional similarity. However, no study has independently calculated BERI for South Korea. This study assessed a nationwide BERI under multiple climate change scenarios using Korean species records and environmental variables. Records of 29 terrestrial mammal species from four national biodiversity surveys were compiled with topographic and bioclimatic variables. Habitat condition was assessed using the InVEST Habitat Quality model with parameters from ensemble species distribution models, compositional similarity using Generalized Dissimilarity Modeling (GDM), and connectivity using least-cost path analysis. BERI was calculated at 5-km resolution under four SSP scenarios across three future periods. The national-scale mammal-based BERI was 0.344, with higher values along the Baekdudaegan mountain range and in major national parks (Seoraksan and Jirisan) and lower values in coastal and urbanized lowlands. BERI generally declined with increasing emissions and longer time horizons, with spatial heterogeneity: central inland forests had the largest decreases, whereas some southern coastal areas showed relative increases. BERI correlated most strongly with slope (r = 0.45), roughness (r = 0.45), and elevation (r = 0.42). This study provides the first independent national-scale BERI assessment for South Korea, providing a scientific basis for implementing KM-GBF Target 8 and for strategically identifying other effective area-based conservation measures (OECMs).
Keywords:
Bioclimatic Ecosystem Resilience Index (BERI), Generalized Dissimilarity Modelling (GDM), Habitat Condition, Biodiversity Conservation Planning, Climate Change Scenarios1. 서론
기후변화는 전 지구적으로 생물다양성을 위협하는 주요 요인이다(Bellard et al., 2012; Garcia et al., 2014; Mooney et al., 2009; Santibáñez et al., 2025). 기후변화로 인해 종의 서식 범위가 위도 및 고도에 따라 이동하고(Barbet‐Massin and Jetz, 2015), 종의 멸종 위험이 증가하며(Urban, 2015), 기존 보호지역의 보전 효과가 감소할 것으로 예측된다(Araújo et al., 2011). 이러한 변화를 정확히 분석하고 예측하는 것은 효과적인 보전 전략 수립의 전제 조건이며(Choi et al., 2019; Pacifici et al., 2015; Staudinger et al., 2013; Urban et al., 2016), 기후변화 시나리오에 기반한 생물다양성 변화 예측과 보전 우선지역 설정에 관한 연구가 활발히 진행되어 왔다(Giakoumi et al., 2025; Keppel et al., 2015; Pereira et al., 2013; Reside et al., 2018).
기후변화에 대응한 생물다양성 보전 전략을 수립하기 위해서는 생태계가 교란을 흡수하고 생물다양성을 유지하는 능력, 즉 생태계 회복력(ecosystem resilience)을 정량적으로 평가할 필요가 있다. 생태계 회복력은 Holling (1973)이 제안한 이래 다양한 분야에서 발전해 온 개념으로(Holling, 1973), Walker and Salt (2012)는 회복력이 단일 수치가 아니라 시스템의 구성 요소와 맥락에 따라 달라지는 창발적 속성임을 강조하였다(Walker and Salt, 2012). 따라서 생태계 회복력을 평가하기 위해서는 무엇에 대한 회복력인지, 어떤 측면을 측정하는지를 명확히 정의해야 한다(Ferrier et al., 2020). 특히 기후변화라는 특정 교란에 대응하여 생물다양성이 유지되는 정도를 평가하는 지표는, 서식지 상태뿐 아니라 종의 분산 가능성과 미래 기후 조건에 따른 종구성 변화까지 종합적으로 고려해야 한다.
생물다양성협약(Convention on Biological Diversity; CBD)은 제10차 당사국총회(COP10)에서 2011–2020년 생물다양성 전략계획의 일환으로 5대 전략목표와 20개 Aichi Biodiversity Targets를 채택한 바 있다. 이 중 Target 15는 생태계 회복력 강화와 훼손된 생태계의 복원을 통해 기후변화 완화·적응에 기여할 것을 목표로 설정하였다. Bioclimatic Ecosystem Resilience Index (BERI)는 이 Target 15의 이행을 평가하기 위한 지표로, 호주 연방과학산업연구기구(The Commonwealth Scientific and Industrial Research Organisation; CSIRO)가 BILBI (Biogeographic modelling Infrastructure for Large-scale Biodiversity Indicators) 체계의 일환으로 개발하였다(Ferrier et al., 2020). BERI는 기후변화에 대응하여 생물다양성을 유지하려는 생태계의 능력을 정량화하며, 서식지 보전성(habitat condition), 연결성(connectivity), 종구성 유사성(compositional similarity)의 세 가지 핵심 요소를 통합하여 산출된다. 서식지 보전성은 인간 활동에 의한 서식지 훼손 정도를 반영하고, 연결성은 생물종이 주변의 양호한 서식지로 이동할 수 있는 정도를 나타내며, 종구성 유사성은 기후변화에 따른 종 구성의 변화 정도를 예측한다(Ferrier et al., 2020). BERI는 서식지 상태만으로는 포착하기 어려운 기후변화 취약성을 효과적으로 반영하는데, 초기 적용 사례인 습윤 열대림 분석에서 서식지가 비교적 온전한 아마존 일부 지역에서도 미래 강수량 감소 전망으로 인해 낮은 BERI 값이 도출된 바 있다(Ferrier et al., 2020). 이후 BERI의 적용 범위는 전 지구 모든 생물군계(산림 및 비산림)로 확장되어 2000년부터 2020년까지의 시계열 자료가 30-arcsecond 해상도로 공개되었으며(Harwood, Ware, et al., 2022), 국가 단위로는 호주 뉴사우스웨일스주에서 산출된 사례가 보고되었다(Harwood, Love, et al., 2022). 현재 BERI는 2022년 CBD COP15에서 채택된 쿤밍-몬트리올 세계 생물다양성 프레임워크(Kunming–Montreal Global Biodiversity Framework; KM-GBF)의 Target 8(기후변화가 생물다양성에 미치는 영향 최소화 및 회복력 강화)을 평가하기 위한 component indicator로 공인되어 국제적 정책 활용도가 높다.
대한민국은 온대 기후대에 속하며 국토의 약 60%가 산림으로 이루어져 있어 산림 생물다양성이 풍부하다. 그러나 기후변화에 따른 종 분포 변화와 서식지 질 저하가 보고되고 있어(Cho et al., 2024; Choi et al., 2021), 기후변화 대응 생물다양성 보전 전략의 과학적 근거가 필요한 상황이다. 국내에서는 국내 자료에 기반한 독자적 BERI 산출 및 생태학적 해석에 관한 학술 연구는 아직 보고된 바 없다. KM-GBF Target 8의 이행 모니터링을 위해서는 전 지구 규모의 BERI뿐 아니라, 국내 종 조사자료와 환경 변수에 기반한 국가 수준의 BERI를 독자적으로 산출할 필요가 있다.
본 연구의 목적은 국내 포유류 종 조사자료와 환경 변수를 기반으로 대한민국 전역의 포유류 기반 BERI를 독자적으로 산출하여, 기후변화에 대응한 생물다양성 보전 전략 수립에 과학적 근거를 제공하는 데 있다. 이를 위해 포유류 출현 자료와 지형·기후 변수를 활용하여 서식지 보전성, 종구성 유사성, 연결성을 종합적으로 평가하고, 다수의 기후변화 시나리오에 따른 BERI의 공간적 변화를 분석하고자 한다. 특히 본 연구는 국내 전국 단위 종 조사자료 기반의 포유류 데이터와 CIMP6 시나리오를 활용하여 포유류 기반의 대한민국 맞춤형 BERI를 독자적으로 산출하였다는 점에서 차별성을 가진다. 이를 통해 국내의 기후변화에 따른 생물다양성 취약지역과 보전 우선지역을 공간적으로 식별하고, 국가 차원의 생물다양성 보전 및 기후변화 적응 전략 수립에 활용 가능한 기초자료를 제시하고자 한다.
2. 재료 및 방법
2.1. 연구대상지
본 연구의 대상지는 대한민국 전역이다(Fig. 1). 대한민국은 약 33° ~ 39°N, 124° ~ 132°E에 위치하며, 쾨펜 기후 구분상 온대 습윤 기후(Cfa, Cwa)와 냉대 기후(Dwa)가 공존한다. 연평균 기온은 남해안 약 14°C에서 내륙 산간 지역 약 6°C까지 분포하고, 연강수량은 1,000 ~ 1,800 mm 범위로 여름철 집중 강수 특성을 보인다(Park et al., 2019). 이러한 기온과 강수의 공간적 변이는 종 분포와 종구성 유사성에 직접적으로 영향을 미치므로, BERI의 종구성 유사성 평가에서 중요한 환경 구배를 형성한다. 지형적으로 국토의 약 64%가 산림으로 구성되어 있으며, 태백산맥을 중심축으로 하는 백두대간이 남북 방향으로 연장된다. 백두대간은 설악산(1,708 m), 태백산(1,567 m), 소백산(1,439 m), 지리산(1,915 m) 등 주요 고봉을 포함하며, 여기에서 분기하는 정맥들이 동서 방향으로 산림 네트워크를 확장한다. 이러한 연속적인 산림 구조는 BERI의 서식지 보전성과 연결성 평가에 핵심적인 경관 요소이다. 특히 백두대간은 국내 산림생태계를 유라시아 대륙의 생태 네트워크와 연결하는 통로 역할을 수행하며, 고도 범위가 넓어 기후변화 시 종의 고도 이동에 유리한 조건을 제공한다. 반면, 수도권을 비롯한 서부 및 남부 해안 저지대는 도시화와 농경지 확대로 인해 서식지 단편화가 진행되어, 서식지 보전성과 연결성이 상대적으로 낮을 것으로 예상된다.
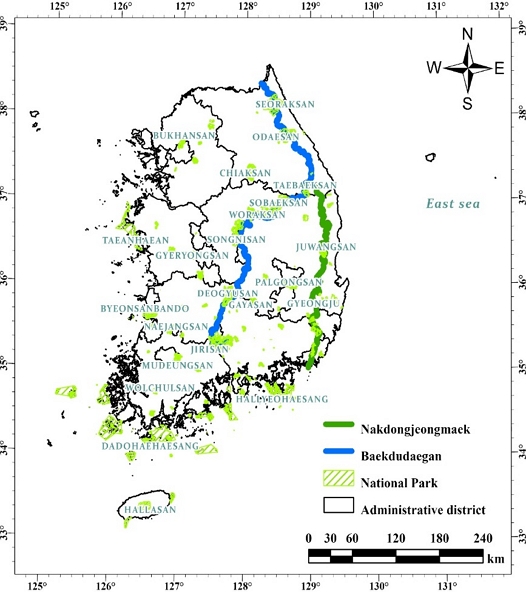
Study area
2.2. 연구 재료
본 연구에서는 국가 종 조사사업을 통해 수집된 포유류 출현 자료를 사용하였다. 자료 출처는 제5차 전국자연환경조사, 전국 내륙습지조사, 특정지역정밀조사, 국립공원생물자원조사이며, 각 조사사업의 세부 정보는 Table 1에 제시하였다. 각 조사사업에서 전체 조사 구역을 1회 이상 완료한 가장 최근 조사 주기의 자료를 사용하였다. 초기 자료로 총 61종의 포유류 출현 기록을 수집하였으며, 종분포모형의 안정적 적합을 위해 출현 지점 수가 30개소 미만인 종을 제외하여 최종적으로 29종을 분석 대상으로 선정하였다(Table A1).

Summary of biodiversity survey data sources used in this study
환경변수는 지형변수와 기후변수로 구분하여 사용하였으며, 전체 변수 목록과 출처는 Table 2에 제시하였다. 지형변수는 국토지리정보원의 수치표고모델(DEM)로부터 산출하였으며, 고도(elevation), 경사도(slope), 지형거칠기지수(Terrain Ruggedness Index; TRI), 지형위치지수(Topographic Position Index; TPI), 지표면 거칠기(roughness), 사면 방향(northness, eastness)을 포함한다(Wilson et al., 2007). TRI는 중심 셀과 주변 셀 간 고도차의 평균으로 지형의 기복 정도를 나타내고, TPI는 중심 셀의 고도와 주변 평균 고도의 차이로 능선·계곡 등 지형적 위치를 구분한다. 사면 방향은 cos (aspect)와 sin (aspect)로 변환하여 각각 northness (북사면 경향)와 eastness (동사면 경향)로 사용하였다. 기후변수는 19개 생물기후변수(bioclimatic variables 1–19)를 사용하였다. 현재 기후 자료는 기상청 기상자료개방포털에서 제공하는 융합기상 자료를 사용하였으며, 시간 단위 기온 및 일강수량 자료를 수집한 후, 이를 기반으로 생물기후변수를 산출하였다. 융합기상 자료는 기상청 및 공공기관 관측자료에 지형효과를 반영한 3차원 객관분석 기법을 적용하여 생산한 분석자료이며 500 m 해상도로 제공한다(KMA, 2026). 본 연구에서는 1 km 해상도로 변환하였으며, 각 격자의 산술평균을 대푯값으로 사용하였다. 생물기후변수 제작은 WorldClim에서 설명하는 제작 코드를 바탕으로 제작하였다. 미래 기후 자료는 WorldClim 2.1에서 제공하는 CMIP6 기반 생물기후변수를 사용하였다(Fick and Hijmans, 2017). 미래 기후 시나리오는 SSP1-2.6, SSP2-4.5, SSP3-7.0, SSP5-8.5의 4개 공유사회경제경로(Shared Socioeconomic Pathways; SSP)를 적용하였으며, 각 SSP에 대해 4개의 전지구기후모형(General Circulation Model; GCM)인 ACCESS-CM2, HadGEM3-GC31-LL, IPSL-CM6A-LR, MIROC6을 사용하였다. 이들 GCM은 한국 및 동아시아 지역에서 기온과 강수의 계절 변동을 비교적 잘 재현하는 것으로 평가되며, 서로 다른 연구기관에서 독립적으로 개발된 모형을 선정하여 모형 간 구조적 다양성을 확보하였다. 미래 시나리오의 대상 기간은 2041 ~ 2060년, 2061 ~ 2080년, 2081 ~ 2100년이다. 토지피복 자료는 환경부 환경공간정보서비스에서 제공하는 중분류 토지피복도를 사용하였으며, 서식지 보전성 평가에 활용하였다.
| (1) |
Summary of environmental variables used for habitat condition assessment and compositional similarity analysis
2.3. 연구 방법
Bioclimatic ecosystem resilience index (BERI)는 기후변화 하에서 자연 생태계의 완전성 및 연결성을 바탕으로 해당 생태계가 종 다양성을 유지할 수 있는 능력을 평가한다. 이를 정량화 하기 위해, 각 서식지의 상태 자료와 기후변화 시 종 구성 유사도 자료를 활용한다. BERI(C값)는 식 (1)과 (2)에 따라 각 Grid cell별로 순차적으로 계산된다. 본 연구에서는 5 km 크기의 격자를 기반으로 BERI를 산출하였다.
Cik는 기후변화 시나리오k에서 Grid cell i의 현재 종구성과 유사할 것으로 예상되는 주변 경관의 연결된 서식지 양을 뜻하고, 서식지 상태 h, 종 구성의 유사성 s, 연결성 d로 평가된다. 여기서, j는 Grid cell을 중심 원형의 buffer zone 내의 cell이고, 원형 buffer zone은 100 km로 설정하였다. dij는 Grid cell i와 j사이의 거리이며, 거리는 최소 비용 통로(Least Cost Path; LCP)로 계산하였다. 최소 비용 통로를 계산하는데 사용되는 저항맵은 0-1로 평가되는 서식지 상태 h를 역변환하여 사용하였다. λ는 생물종이 기후변화 시나리오에 대응하여 주변의 온전한 서식지로 분산할 수 있을 것으로 예상되는 거리에 중간 값이며, 거리 d에 따른 분산 확률(e-dij/λ)의 감소율을 조절한다. 본 연구에서 λ는 10 km, 25 km, 50 km의 세 가지 값을 적용한 후, 각 결과의 평균을 최종 BERI 산출에 사용하였다. 서식지 상태 h는 Integrated Valuation of Ecosystem Services and Tradeoffs Habitat Quality (InVEST HQ) model을 기반으로 도출하여 적용하였고, 종 구성의 유사성 s는 Generalized dissimilarity modelling (GDM)을 통해 도출하였다. Buffer zone과 분산 거리 λ는 본 연구에 사용된 포유류들의 행동권 범위를 고려하여 설정하였다.
| (2) |
BERIi는 각 기후변화 시나리오에서 산출된 Cik와 Ci0로 계산된다. Ci0는 기후변화가 없는 현재 상태에서 Grid cell i의 주변 연결성이 완전히 이상적일 때 얻을 수 있는 최대값이다. 연결성이 완전히 이상적인 상황은 서식지 상태 h가 전부 1로 가정된 상태를 뜻한다. 따라서, BERIi는 기후변화 시나리오k부터 m까지의 평균과 최소값이 현재 기후 조건 대비 얼마나 유지되는지를 평가한다.
| (3) |
BERIreporting-unit는 연구 대상지 내 Grid cell들의 개별 BERI값에 대한 종합적인 점수이다. 계산된 BERIi와 가중치 wi로 이루어지며, 가중치 wi는 grid cell i와 주변 grid cell 간 종 구성 유사도 sij의 합의 역수로 정의된다. 이를 통해 다른 지역과 유사성이 낮은, 즉 고유성이 높은 지역의 격자가 상대적으로 reporting unit 산출에 더 크게 반영되도록 하였다. 이에 따라, BERIreporting-unit는 연구 대상지별 고유성을 고려하여 대상지 간 비교를 할 수 있도록 하는 대표 점수로 이해할 수 있다.
BERI 계산에 대한 자세한 내용은 Ferrier et al. (2020)에서 확인할 수 있다(Ferrier et al., 2020). 본 연구는 이를 바탕으로 국내 종 출현자료와 생물 종별 생태적 특성을 반영하여 제작된 국내 서식지 상태 평가 결과 및 CMIP6 기반 미래 기후시나리오를 적용하여 대한민국의 생태·기후 조건에 맞게 재구성하였다.
서식지 상태는 현재 서식지가 인간 활동에 의해 훼손되지 않은 정도를 나타내며, BERI 산출에서 각 grid cell의 생태적 건전성을 반영한다. 본 연구에서는 Integrated Valuation of Ecosystem Services and Tradeoffs Habitat Quality (InVEST HQ) 모델을 사용하여 서식지의 상태를 0(완전 훼손)에서 1(완전 보전) 범위로 평가하였다. InVEST HQ 모델은 각 토지피복 유형의 서식지 적합성(habitat suitability)과 위협요인(도로, 농경지, 도시지역 등)에 대한 민감도(sensitivity)를 입력 파라미터로 요구한다. 위협요인의 영향은 위협원으로부터의 거리에 따라 감소하며, 각 토지피복 유형이 위협에 얼마나 민감한지에 따라 서식지 질이 차등적으로 감소한다. 본 연구에서는 이러한 입력 파라미터를 종분포모형(Species Distribution Model; SDM) 기반의 방법론으로 도출하였고(Kim et al., 2026), 자세한 파라미터 값은 Table A2에 제시하였다. 구체적으로, 포유류 29종의 출현 자료와 지형, 기후, 토지피복 변수를 사용하여 앙상블 SDM을 구축하고, 각 종의 서식지 적합성 맵을 제작한 후, 토지피복 유형별 서식지 적합성 지수 및 위협요인에 대한 민감도 지수를 종합적으로 산출하였다. 파라미터 도출 방법의 상세한 내용은 Kim et al. (2026)에 기술되어 있다.
종구성 유사성은 두 지점 간 종 구성이 유사한 정도를 나타내며, BERI 산출에서 기후변화에 따른 종 구성 변화를 예측하는 데 사용된다. 본 연구에서는 Generalized Dissimilarity Modelling(GDM)을 사용하여 종구성 유사성을 0(두 지점의 종 구성이 완전히 상이)에서 1(종 구성이 동일)까지의 범위로 산출하였다(Mokany et al., 2022). GDM은 사이트 쌍 간의 생물학적 비유사도(Sørensen index 기반)를 환경적 거리와 지리적 거리의 함수로 모형화한다. 각 환경변수의 기여도는 I-스플라인(I-spline) 기저함수를 사용하여 비선형적으로 추정되며, 비음수 최소제곱 회귀(non-negative least squares regression)로 적합된다(Ramsay, 1988). I-스플라인의 기저함수 개수는 변수당 3개로 설정하였다(gdm R 패키지 기본값). 입력 자료로 포유류 29종의 출현 자료와 지형변수(고도, 경사도, TRI, TPI, roughness, northness, eastness) 및 현재 생물기후변수(bioclimatic variables 1–19)를 사용하였다. 지형변수 및 기후변수를 포함하는 환경변수는 5 km, 10 km, 20 km 해상도로 각각 제작되었으며, GDM 결과 가장 높은 적합도를 보이는 모델을 사용하였다. GDM으로 추정된 환경-비유사도 관계에 미래 기후변수를 적용하면, 현재 시점의 종 구성과 미래 시점의 종 구성 간 유사도를 공간적으로 예측할 수 있다. 이를 통해 BERI 산출에 필요한 종구성 유사성 항을 도출하였다. GDM의 상세한 이론적 배경은 Mokany et al. (2022)에 기술되어 있다.
3. 결과
3.1. Habitat condition 공간 분포
Bioclimatic Ecosystem Resilience Index (BERI) 산출을 위한 서식지 상태 평가 결과는 Fig. 2와 같다. 서식지 상태는 0.13–1.00의 범위에서 평균 0.69(표준편차 0.20)로 나타났다. 산림 지역에서 서식지 상태가 양호하였으며, 특히 백두대간을 따라 연속적으로 높은 값이 분포하였다. 설악산, 오대산, 월악산, 지리산 국립공원 지역은 0.9 이상의 서식지 상태를 유지하였다. 백두대간에서 분기하는 정맥 중 태백산에서 금정산까지 이어지는 낙동정맥이 다른 정맥에 비해 서식지 상태가 상대적으로 높게 나타났다. 제주도에서는 한라산 국립공원을 중심으로 양호한 서식지 상태가 확인되었다. 반면, 수도권, 부산, 대구 등 대도시 주변 지역과 서해안 평야 지역은 전반적으로 서식지 상태 값이 낮았다.
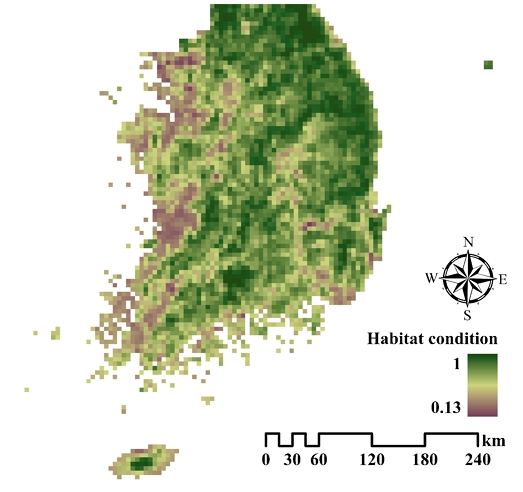
Spatial distribution of habitat condition in South Korea
3.2. 기후변화 시나리오별 Compositional similarity 변화
종 구성 유사도를 평가하기 위한 Generalized dissimilarity modelling (GDM) 결과는 다음과 같다(Table 3). GDM의 설명력은 격자가 커질수록 높아지는 경향을 보였으며, 5 km 격자에서 46.956%의 설명력을 보여주었으나 20 km 격자에서는 58.948%의 설명력을 나타냈다. 이는 격자 단위가 커질수록 여러 조사지점과 출현정보가 하나의 격자로 합쳐지면서 종 목록이 안정화된 형태로 반영되고, 미소서식지 수준의 차이보다 지형·기후 등 광역적인 환경구배에 영향을 받는 포유류의 특성과 잘 대응되었기 때문으로 판단된다. 일반적인 GDM의 설명력은 20 ~ 50% 범위이며(Mokany et al., 2022), 기존 선행 연구에서 대부분 40% 이하의 설명력으로 나타난 것에 비해(Guerin et al., 2021; van der Mescht et al., 2018), 본 연구는 높은 수준의 설명력을 가지는 모형을 구축한 것으로 평가할 수 있다. 모든 공간 규모에서 Bio15(Precipitation Seasonality (Coefficient of Variation))는 가장 높은 I-spline 계수를 보여주었다. 이는 Bio15가 국내 포유류 군집 분포의 유사성에 가장 큰 영향을 미치는 변수임을 보여준다. Geographic distance (Geo)는 5 km, 10 km 격자에서 두번째로 중요한 변수로 작용하였지만 20 km 격자에서는 거리보다 환경변수가 더 중요한 변수로 작용하였다. 또한, 5 km 격자에서는 중요하게 평가되지 않은 Bio 14(Precipitation of Driest Month)가 10 km, 20 km에서 중요한 변수로 평가되었다. 격자가 커질수록 거리 요인보다 기후 요인이 더 크게 작용하며, 강수량 정보가 중요한 것으로 나타났다. 본 연구에서는 설명력이 가장 높은 20 km GDM 결과를 사용하였다.
Summary of generalized dissimilarity models (GDM) across different grid sizes
현재 시점과 기후변화 시나리오에 따른 종구성 유사성 결과는 Fig. 3에 제시하였다. 현재 시점에서의 종구성 유사성은 위도에 따라 뚜렷한 차이를 보였다. 저위도 지역, 특히 남해안 도서 지역에서 주변과의 종구성 유사성이 낮았으며, 고위도 내륙 지역으로 갈수록 유사성이 높아지는 경향을 나타냈다. 기후변화 시나리오를 적용한 결과, 모든 시나리오에서 유사한 공간적 경향이 관찰되었다. 고위도 내륙 지역은 기후변화 하에서도 비교적 안정적인 종구성을 유지하는 반면, 남부 해안 및 도서 지역에서는 종구성 유사성이 현저히 감소하였다. 동해안 지역에서도 기후변화 시나리오 적용 시 종구성 유사성이 낮게 나타났다. 탄소 배출량이 높은 시나리오(SSP5-8.5)와 먼 미래 시점(2081 ~ 2100)일수록 종구성 유사성의 감소 폭이 확대되었다.
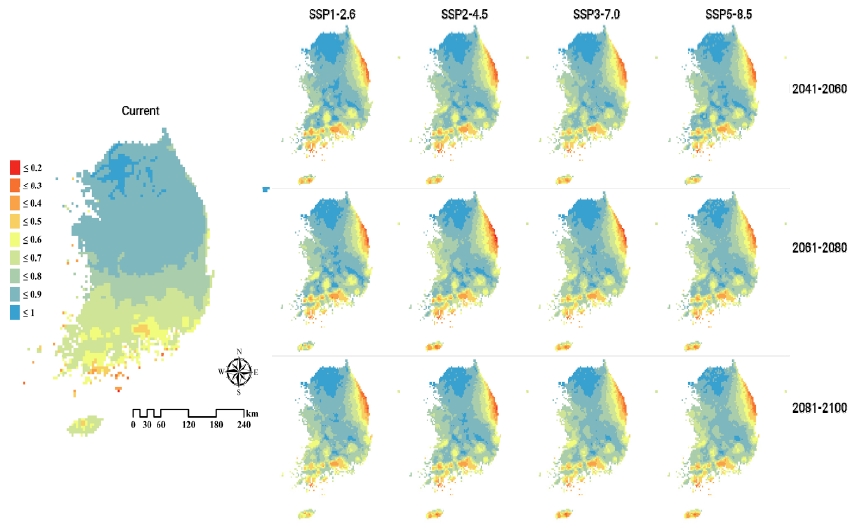
Projected spatial distribution of species compositional similarity under different climate change scenarios in South Korea
3.3. 기후변화 시나리오에 따른 BERI 변화 분석
기후변화 시나리오별 SSP1-2.6 대비 BERI 변화량(∆BERI)을 Violin plot (Fig. 4)과 공간 분포도(Fig. 5)로 나타내었다. BERI는 현재 조건 대비 미래 시나리오에서의 변화를 반영한 지수이기 때문에, 본 연구에서는 가장 이상적인 SSP1-2.6 시나리오와의 대비를 통해 각 시나리오에 따른 영향을 평가하였다. 전반적으로 탄소 배출량이 증가할수록 BERI는 감소하는 경향을 보였으나, 시기별 변화 양상은 비선형적으로 나타났다. 2041 ~ 2060 기간에는 BERI 감소가 비교적 작았고, 2061 ~ 2080 기간에서 감소가 가장 뚜렷하였으며, 2081 ~ 2100 기간에서는 SSP2-4.5와 SSP3-7.0 시나리오에서 중앙값 기준 감소 폭이 2061 ~ 2080보다 오히려 줄어드는 경향이 관찰되었다. 한편, 시기가 멀어질수록 Violin plot 분포의 하단 꼬리가 길어지는 경향이 뚜렷하였다. 특히 2081 ~ 2100 SSP3-7.0에서는 BERI 차이값이 -0.10 이하에 달하는 극단값이 나타났다. 이러한 꼬리의 확장은 공간 분포도(Fig. 5)와 함께 해석할 때 그 의미가 명확해진다. 공간 분포도에서는 대부분의 시나리오에서 중부 내륙 산림 지역의 BERI가 감소(음의 값)하는 반면, 남부 해안 일부 지역에서는 증가(양의 값)하는 공간적 양극화 패턴이 확인되었다. 즉, Violin plot에서 관찰되는 분포의 꼬리 확장은 전국적으로 균일한 감소가 아니라, 지역 간 BERI 변화 방향이 상반되는 공간적 이질성에 기인한 것이다.
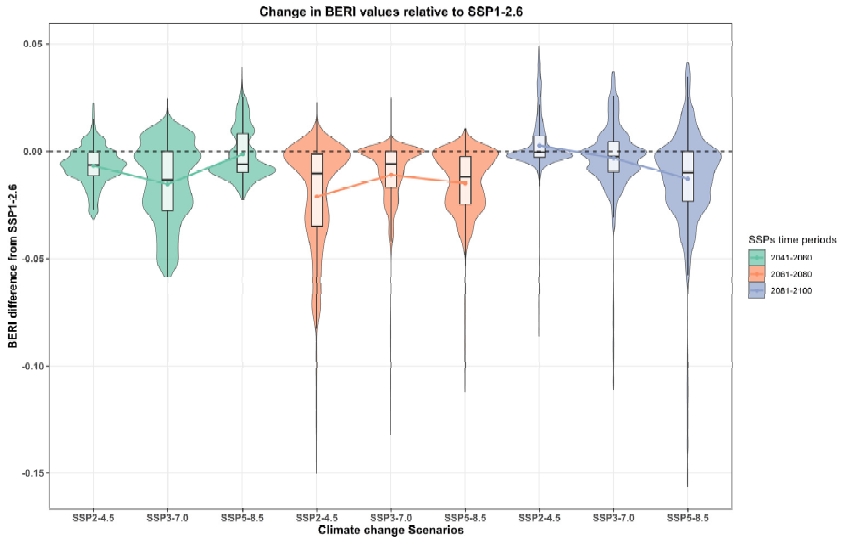
Violin plots of ΔBERI relative to SSP1-2.6 under different climate change scenarios. Lines represent the mean trend connecting average values across time periods
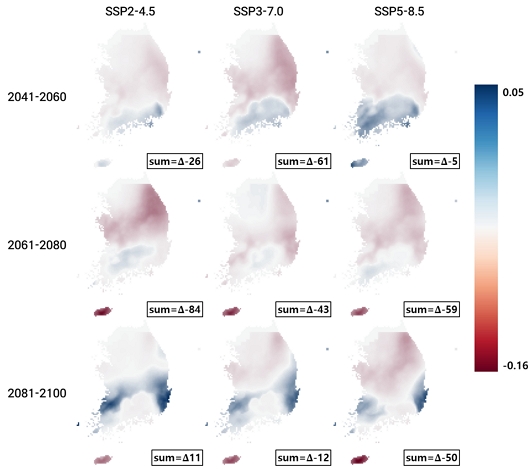
Spatial distribution of BERI changes relative to SSP1-2.6 across scenarios and time periods
BERI의 변화를 기간별로 유사한 패턴을 확인할 수 있었다. 2041 ~ 2060에는 남부 지역에서 BERI 증가 패턴이 일부 관찰되었으며, 중부지역과 북동부 지역에서 BERI 감소 패턴이 확인되었다. 이러한 경향은 SSP3-7.0에서 가장 강하게 나타났다. SSP2-4.5에서 SSP3-7.0으로 진행하면 감소 패턴이 강화되었으나, SSP5-8.5에서는 오히려 감소 패턴이 약화되고 남부 지역의 증가 패턴이 확대되었다. 이로 인해 SSP5-8.5의 2041 ~ 2060 총합은 Δ-5로 거의 변화가 없는 것처럼 나타났으나, 이는 중부 내륙에서의 감소와 남부·해안에서의 증가가 상쇄된 결과이며, 실제로는 내부적으로 큰 공간적 재배치가 진행되고 있었다. 이처럼 동일 시점에서 SSP2-4.5(Δ-26)보다 SSP5-8.5(Δ-5)의 총합 감소가 작게 나타나는 것은, 탄소 배출량의 크기 순서가 BERI 변화량의 크기 순서와 반드시 일치하지 않음을 보여준다. 이는 BERI의 핵심 구성요소인 종구성 유사성이 GDM을 통해 산출되며, GDM에서 가장 높은 기여도를 보인 Bio15(강수 계절성)가 SSP 시나리오별로 상이한 방향과 크기로 변화하기 때문이다(Table 3).
Bio15(강수 계절성)과의 연관성을 파악하기 위하여, BERI와 마찬가지로 SSP1-2.6 대비 각 시나리오·시기별 Bio15 변화량을 공간적으로 나타내었다(Fig. 5). Bio15 변화는 위도와 시나리오에 따라 뚜렷한 공간적 차이를 보였다. 2041 ~ 2060 기간에는 남부 및 동부 해안 지역에서 강수 계절성이 크게 감소한 반면, 북부 내륙 지역에서는 오히려 증가하는 남북 상반 패턴이 나타났으며, 이러한 경향은 탄소 배출량이 높은 SSP5-8.5에서 가장 뚜렷하였다. 2061 ~ 2080 기간에는 SSP2-4.5에서 북부 지역의 강수 계절성이 크게 감소하였는데, 이 시기·시나리오는 BERI 감소 폭이 가장 컸던 조건과 일치한다(Fig. 5). 반면, BERI가 회복된 2081 ~ 2100 SSP2-4.5에서는 대부분의 지역에서 강수 계절성 변화가 작아지며 안정화되는 양상을 보였다. 이처럼 강수 계절성의 공간적 변화 패턴은 BERI 변화의 공간 패턴과 대체로 대응하였으며, GDM에서 Bio15가 종구성 비유사도에 가장 큰 기여를 하는 변수로 확인된 결과(Table 3)와 함께, 강수 계절성의 변화가 종구성 유사성을 매개로 BERI 변화에 영향을 미쳤음을 시사한다.
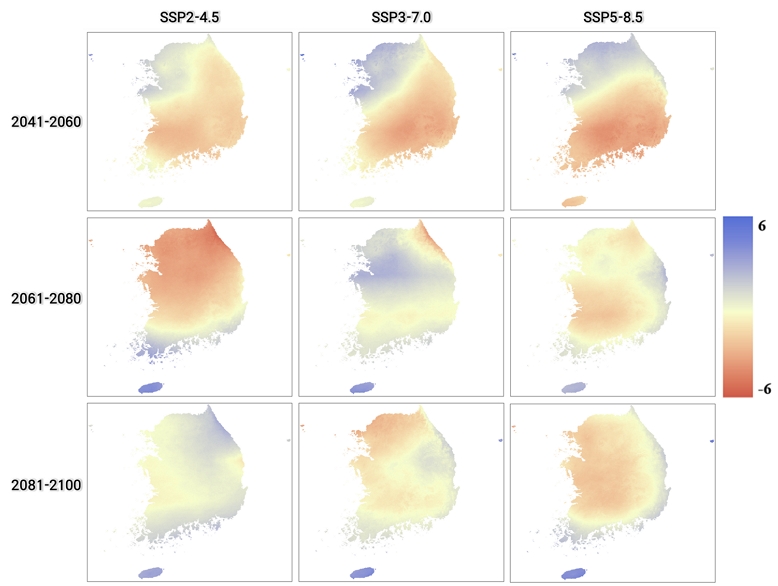
Spatial distribution of BIO15 differences from the SSP1-2.6 scenario across climate scenarios and future periods
2061 ~ 2080에서도 마찬가지로 남부 지역에서의 증가 패턴과 중부 지역과 동부 지역에서의 감소 패턴이 유지되었다. SSP2-4.5에서 SSP3-7.0으로 진행하면 감소 패턴이 약화되고 북부에서 증가 패턴이 확대되었으나, SSP5-8.5에서는 다시 감소 패턴이 강화되고 북부 내륙의 증가 패턴이 축소되었다. 이 기간은 모든 시나리오에서 BERI 감소가 가장 크게 나타난 시기로, 특히 SSP2-4.5에서 총합이 Δ-84로 가장 큰 감소 폭을 보였다. 2081 ~ 2100에서는 대체로 BERI가 증가한 지역이 뚜렷하게 나타났다. SSP2-4.5에서는 증가 패턴이 감소 패턴보다 우세하여 총합이 Δ+11로 양의 값으로 전환되었다. SSP3-7.0에서는 중부를 기점으로 북쪽에서 감소, 남쪽에서 개선되는 남북 분화 패턴이 나타났다. SSP5-8.5로 진행될수록 감소 패턴이 확대되며 강화되고 증가 패턴이 축소되며 약화되었으며, 서해안과 동해안 끝자락에서만 소폭의 개선이 관찰되었다. 제주도에서는 SSP5-8.5에서 현저한 BERI 감소가 나타났다.
각각의 시나리오 별 BERI 변화량을 모두 합산한 결과 SSP2-4.5의 2081 ~ 2100를 제외하면(sum=∆11), 모든 시나리오에서 BERI는 감소하였다. 가장 큰 폭으로 감소한 시나리오는 SSP2-4.5의 2061 ~ 2080이고(sum=∆-84), 2061 ~ 2080이 대부분 크게 감소하였다. 특히 제주도 섬지역은 대부분의 시나리오에서 내륙보다 BERI 감소 폭이 크게 나타났다. 일부 지역과 시기에서 BERI 증가가 관찰되기도 하였으나, 그 증가 폭은 최대 0.05 수준으로 감소 폭(최대 -0.16)에 비해 현저히 작았다. 종합하면, 탄소 배출 시나리오와 시기에 따라 변화의 크기와 공간 패턴은 상이하였으나, 모든 시나리오에서 BERI 감소가 공통적으로 확인되었으며, 이를 통해 기후변화에 취약한 지역을 일관되게 식별할 수 있었다.
3.4. 전국 BERI 산출 결과 및 환경변수와의 상관관계
4개 GCM과 4개 SSP 시나리오의 평균으로 산출한 각 grid cell의 BERI는 Fig. 7에 제시하였다. BERI는 0-0.58 범위에서 평균 0.37(표준편차 0.11)로 나타났다. 종 구성 유사도를 고려하여 대한민국의 종합적인 BERI를 산출한 BERI reporting unit은 0.344로 분석되었다. 이는 단순한 cell 평균보다 다소 낮은 값으로, reporting unit은 종구성 유사도가 낮은 지역, 즉 생물군집 조성의 고유성이 높은 지역에 더 높은 가중치가 부여된 산출 방식에서 기인한다. 이는 상대적으로 고유한 포유류 종 구성을 가진 지역이 생물기후적 회복력이 전체 지역보다 낮고 기후변화에 취약할 가능성을 시사한다.
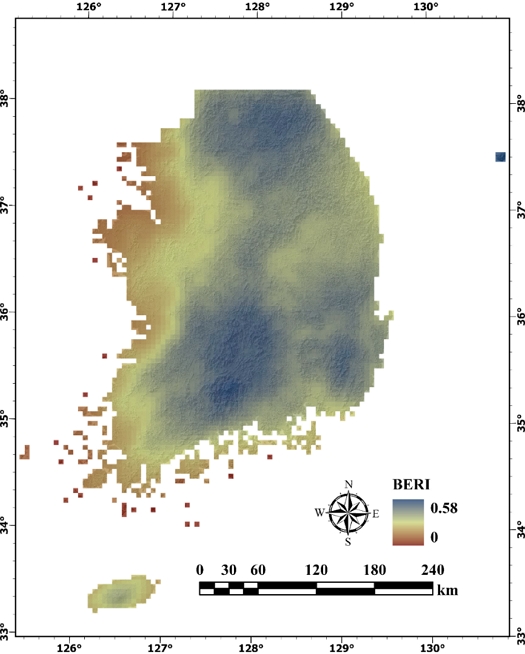
Spatial distribution of BERI (Biodiversity Ecosystem Resilience Index) across the Korean Peninsula
BERI의 공간 분포를 살펴보면, 해안 지역 및 도시 지역에서 BERI가 낮았고, 백두대간과 영남 지역의 고도가 높은 산림 지역에서 높게 평가되었다. BERI와 환경변수 간의 Pearson 상관분석 결과(Fig. 8), 지형변수 중 경사도(slope, r = 0.45), 지표 거칠기(roughness, r = 0.45), 고도(elevation, r = 0.42)가 BERI와 가장 강한 양의 상관관계를 보였다. BERI의 공간 분포 맵(Fig. 7)에서도 고도가 높은 백두대간 및 영남 지역의 산림에서 높게 나타난 것과 동일한 결과이다. 산림에서 경사도 및 거칠기는 고도와 강한 상관관계가 있다는 것을 고려하면, 산림 고도가 대표적으로 BERI와 강한 양의 상관관계가 있다고 판단된다. 기후변수 중에서는 습한 분기의 평균기온(bio8, r = -0.34)과 따듯한 분기의 평균기온(bio10, r = -0.29)이 가장 강한 음의 상관관계를 나타냈지만, 상관관계는 고도보다 낮았다.
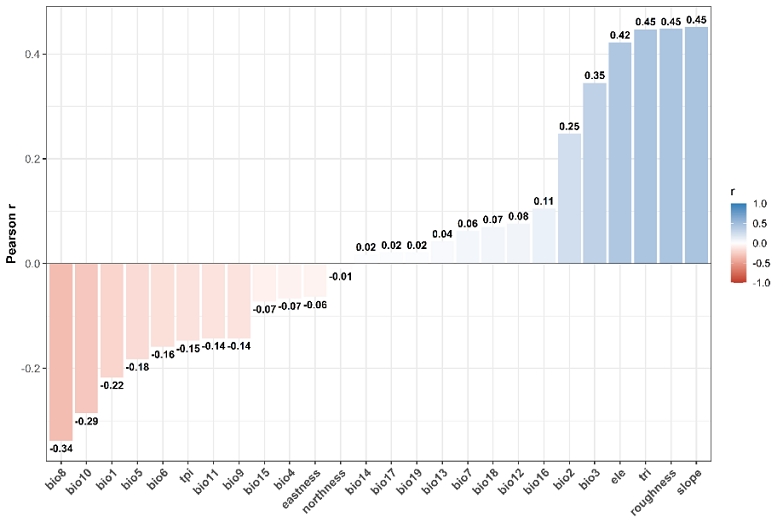
Pearson correlation coefficients between BERI (Bioclimatic ecosystem resilience index) and environmental variables
4. 논의
본 연구의 서식지 상태(habitat condition) 결과는 백두대간을 중심으로 한 산림 지역에서 높은 생태적 건전성이 유지되고 있음을 보여주며, 이는 국내 경관 수준의 포유류 서식지 연구 결과와 일치한다(Jeong et al., 2024; Park et al., 2025). 특히 백두대간의 생태적 중요성은 본 연구에서도 동일하게 확인되었으며, 백두대간에서 분기하여 동쪽 산맥을 따라 연장되는 낙동정맥 또한 생태적으로 높은 가치를 지닌 것으로 나타났다(Kim et al., 2023). 백두대간과 국립공원의 법적 보호 체계가 국내 산림의 서식지 보전성과 연결성 유지에 기여하고 있음을 시사하며, 최근 국립공원으로 지정된 금정산은 낙동정맥의 남단에서 산림 연속성을 보전하는 거점으로서 의의가 있다. 한편, 제주도는 내륙과 구별되는 도서 생물다양성 특성을 가지고 있으며, 한라산 국립공원을 중심으로 양호한 서식 상태가 확인되었다. 이러한 본 연구 결과는 다양한 국내 현장조사 기반의 종 출현자료를 활용하였기 때문에 국내의 생태적 중요 서식지를 효과적으로 식별해낸 것으로 판단된다.
종구성 유사성은 고위도·고도 지역에서 장기간 유지되고, 남부 및 동부 해안 지역에서 기후변화에 취약한 것으로 나타났다. 이러한 패턴은 기후변화에 따라 남쪽에 서식하는 포유류 종의 분포가 북상하거나 고도가 높은 지역으로 이동할 것이라는 예측과 부합하며, 고위도·고도 지역이 기후 피난처(climate refugia)로서 역할을 수행함을 보여준다. 이러한 기후변화에 대한 종구성 반응은 포유류뿐만 아니라 식물에서도 유사하게 보고되었다(Cho et al., 2024). GDM 분석에서는 강수 계절성(Bio15)이 종구성 비유사도에 가장 큰 기여를 하는 변수로 확인되었다(Table 3). 강수 계절성은 연중 강수의 시간적 집중도를 나타내는 지표로, 그 값이 커진다는 것은 강수가 특정 시기에 집중되고 나머지 기간의 건조가 심화됨을, 즉 건기와 우기의 구분이 뚜렷해짐을 의미한다. 이러한 강수 체계의 변화는 먹이자원과 서식환경의 계절적 가용성을 교란하여 종 구성의 변화를 야기할 수 있다. 생태계 회복력의 관점에서, 남부 해안 지역에서 관찰된 강수 계절성의 시간적 전환은 종이 적응해야 할 기후 조건이 단기와 장기에 걸쳐 상이하게 변화함을 의미한다. 근미래에는 완화된 강수 조건이 종구성 유사성을 일시적으로 유지시킬 수 있으나, 먼 미래에 건기·우기 분화가 심화되면 종이 감내해야 하는 환경 변동의 폭이 커져 종구성이 변화할 수 있다. 반대로, 강수 계절성이 안정적으로 유지되는 고위도·고도 내륙 지역은 종이 기존의 서식 조건을 유지할 수 있어 생태계 회복력이 보전되며, 이는 이들 지역이 기후 피난처로 기능하는 기후적 근거가 된다.
BERI의 시나리오별 변화 패턴은 탄소 배출 경로의 선택이 생태계 회복력의 장기적 궤적에 영향을 미치는 것을 보여준다. SSP2-4.5에서 2061~2080에 악화되었다가 2081 ~ 2100에 회복되는 패턴은, 저탄소 경로에서는 기후가 안정화 단계에 접어들면서 생태계 회복력이 회복될 수 있는 가능성을 시사한다. 반면, SSP5-8.5에서는 시간이 경과할수록 BERI 감소 범위가 지속적으로 확대되어, 고탄소 경로에서는 이러한 회복이 나타나지 않았다. 특히 제주도는 도서 특성상 종의 이동 경로가 제한적이어서, 고배출 시나리오에서 기후변화 취약성이 가장 뚜렷하게 나타났다. 한편, 백두대간 지역은 모든 시나리오에서 높은 BERI를 유지하였으나(Fig. A1), BERI가 가장 높은 이 지역에서도 감소가 진행된다는 점은 기후변화로 인한 생물다양성 감소가 보전 가치가 높은 핵심 지역에도 광범위하게 영향을 미치고 있음을 보여준다.
다만 남부 지역의 부분적 BERI 개선은 해석에 주의가 필요하다. BERI의 종구성 유사성은 현재 종구성이 미래 기후에서 유지되는 정도를 평가하므로, 근미래 남부에서의 BERI 증가는 강수 계절성 변화가 완화되어 현재 종구성이 유지될 여지가 커진 결과로 해석된다. 그러나 이는 어디까지나 상대적으로 완화된 조건에서의 일시적 현상이며, 전체적으로 BERI의 증가폭은 매우 낮고(최대 0.05), 대부분의 시나리오와 지역에서 BERI는 감소하였다. 또한 BERI는 현재 종구성과의 유사성을 기준으로 하므로, 기존 종구성이 다른 종구성으로 대체되는 경우 그 전환이 생태적으로 안정적인지 여부와 무관하게 낮은 값으로 평가된다는 점에 유의해야 한다. 따라서 BERI 감소가 관찰되는 지역에서 실제로 어떤 종구성 변화가 일어나는지에 대한 추가적인 분석이 필요하다.
BERI는 서식지 상태, 연결성, 종구성 유사성을 하나의 체계 내에서 종합적으로 평가한다는 점에서 기존의 생물다양성 지표와 차별화된다. BERI의 공간 분포를 국내 보호지역 체계와 비교하면 몇 가지 중요한 시사점을 도출할 수 있다. 첫째, 설악산과 지리산 국립공원은 모든 시나리오에서 높은 BERI를 유지하여 기후변화 대응 핵심 서식지로서의 가치가 확인되었다. 이 두 지역은 각각 대한민국 중북부와 남부의 최고봉을 포함하며, 넓은 면적의 연속적인 산림과 높은 고도 범위를 가지고 있어 종의 고도 이동에 유리한 조건을 갖추고 있다. 둘째, 영남 지역의 산림은 낙동정맥과 가지산, 운문산 등을 중심으로 비교적 높은 BERI를 나타냈으나, 법적 보호지역 지정이 상대적으로 적어 향후 보호 확대의 필요성이 제기된다. 셋째, 백두대간의 중부 구간(태백산–소백산)은 현재 시점에서 높은 서식지 보전성을 보이나, SSP3-7.0 이상의 시나리오에서 BERI가 점차 감소하였다. 이는 서식지 보전성은 양호하나 기후변화에 따른 종구성 변화에는 취약할 수 있음을 의미하며, 설악산과 지리산을 연결하는 생태 통로로서 연결성 유지 관리가 특히 중요하다. 넷째, 해안 및 도서 지역은 서식지 보전성이 양호한 지역에서도 BERI가 전반적으로 낮게 나타나, 서식지 복원을 통한 연결성 확보가 장기적 보전 전략에서 고려되어야 한다. 이러한 결과는 Other Effective area-based Conservation Measures (OECM)의 전략적 배치에 과학적 근거를 제공한다. 쿤밍-몬트리올 생물다양성 프레임워크는 보호지역과 OECM을 포함하여 전 지구 육지 면적의 최소 30%를 보전·관리할 것을 목표로 하고 있다(Diversity CoB, 2022). OECM은 기존 보호지역 간 연결성을 강화하여 보전 효과를 더 넓은 경관으로 확장하며(Brodie, Deith, et al., 2025), 유전자 흐름(Alves-Pinto et al., 2021), 기후변화에 대응하는 종의 이동(Williams et al., 2020), 장기적인 개체군 유지(Brodie et al., 2016; Brodie, Gonzalez, et al., 2025)에 기여한다. 본 연구에서 BERI가 높게 유지되는 핵심 지역(설악산, 지리산, 영남 산림)과 이들을 연결하는 산림 회랑에서의 BERI 감소 경향은 OECM의 우선 배치 대상 지역을 식별하는 데 참고자료를 제공할 수 있다.
본 연구에서 산출한 대한민국의 국가 수준 BERI는 0.344로, CSIRO가 전 지구 규모 자료를 기반으로 제시한 0.285보다 높게 나타났다. 이러한 차이는 여러 요인에 기인하는 것으로 판단된다. 첫째, 종 자료의 차이로, CSIRO는 전 지구 규모의 종 분포 데이터베이스를 사용한 반면, 본 연구는 국가 종 조사사업에서 수집된 현장 기반 포유류 출현 자료를 사용하여 국내 종 분포를 보다 정밀하게 반영하였다. 둘째, 환경변수의 공간 해상도 및 출처가 상이하며, 셋째, GDM 학습 데이터와 InVEST HQ 파라미터 도출 방법 등 세부 모형 구축 과정의 차이가 누적된 결과로 해석된다.
본 연구의 한계로는 다음을 고려해야 한다. 첫째, 본 연구는 포유류를 대상으로 BERI를 산출하였다는 점에서 그 해석 범위에 유의할 필요가 있다. Ferrier et al. (2020)의 BERI는 전 지구 규모의 다양한 분류군을 대상으로 개발된 지표이므로, 포유류만으로 전체 생물다양성의 회복력을 대표할 수는 없다. 다만 본 연구에서 포유류를 우선 대상으로 설정한 것은, 포유류가 다른 분류군에 비해 상대적으로 넓은 행동권(home range)과 이동 능력을 가져 서식지 질과 연결성 단절에 민감하게 반응하는 분류군이기 때문이다. 특히 BERI는 서식지 상태뿐 아니라 서식지 연결성에 기반하여 종이 새로운 기후 조건에 대응하여 적절한 서식지로 이동할 수 있는 능력에 크게 의존하는 지표이므로, 이동성과 서식지 연결성에 민감한 포유류는 국내 육상생태계의 기후변화 대응 잠재력과 공간적 취약성을 평가하는 데 유용한 지표군이 될 수 있다. 또한 본 연구는 각 포유류 종에 대해 개별 앙상블 SDM을 구축하여 종별 생태적 특성과 환경 반응을 반영하고, 분류군 특성에 맞는 분산 거리 파라미터를 적용하였다. 모든 분류군을 하나의 BERI로 통합하는 방식은 생물다양성의 전반적 패턴을 평가할 수 있으나, 분류군별 생태적 특성과 기후변화 반응의 차이를 반영하기 어렵고 분류군에 맞는 거리 파라미터를 설정할 수 없다는 한계가 있다(Wu et al., 2021). 따라서 본 연구의 결과는 국내 포유류를 기반으로 한 생태계 회복력의 공간적 패턴으로 해석되어야 하며, 조류, 양서·파충류, 식물 등 이동성과 기후 민감도가 상이한 분류군으로 확대할 경우 서로 다른 취약성 패턴이 나타날 수 있다. 둘째, SDM 기반의 InVEST HQ 파라미터 도출 과정에서 모형 불확실성이 서식지 보전성 평가에 전파될 수 있으며, 이에 대한 민감도 분석이 필요하다. 셋째, 본 연구에서는 현재 토지피복만을 사용하였으나, 미래 토지이용 변화 시나리오를 결합하면 보다 현실적인 BERI 예측이 가능할 것으로 판단된다. 또한 본 연구에서는 현재 기후조건을 국내 환경에 보다 적합하게 반영하기 위해 기상청 융합기상자료를 이용하여 생물기후변수를 구축하였다. 이 자료는 국내 관측자료와 지형효과를 반영한 격자형 기후자료로, 우리나라의 복잡한 지형과 국지적 기후 특성을 반영하는 데 장점이 있다. 반면 미래 기후조건은 CMIP6 기반 WorldClim 생물기후변수를 활용하였으므로, 현재와 미래 기후자료 간에는 원자료, 공간보간 및 보정 절차, 지형효과 반영 방식의 차이가 존재한다. 이러한 자료체계의 차이는 현재-미래 기후조건 간 연속성에 영향을 미칠 수 있으며, GDM 기반 종구성 유사성 예측과 미래 BERI 산출 결과에도 일부 불확실성으로 작용할 가능성이 있다. 따라서 본 연구의 미래 BERI 결과는 시나리오 간 상대적 변화 양상을 중심으로 해석하는 것이 적절하며, 절대적 변화량 해석에는 기후 입력자료의 불확실성을 함께 고려할 필요가 있다. 향후 연구에서는 동일한 기준자료를 기반으로 현재 및 미래 생물기후변수를 구축하거나, 자료원 차이에 따른 민감도 분석을 통해 기후 입력자료의 일관성과 신뢰성을 높일 필요가 있다.
5. 결론
본 연구는 국내 종 조사자료와 환경 변수를 기반으로 대한민국 전역의 Bioclimatic Ecosystem Resilience Index (BERI)를 독자적으로 산출하여, 기후변화에 대응한 생물다양성 유지 능력을 정량적으로 평가하였다. 포유류 29종의 출현 자료와 지형·기후 변수를 활용하여 서식지 상태(InVEST HQ), 종구성 유사성(GDM), 연결성(LCP)을 종합적으로 분석한 결과, 대한민국의 국가 수준 BERI는 0.344로 산출되었다.
주요 결과를 요약하면 다음과 같다. 첫째, 서식지 보전성은 백두대간을 중심으로 설악산, 오대산, 월악산, 지리산 등 국립공원 지역에서 높게 나타났으며, 낙동정맥과 한라산 국립공원에서도 우수한 서식지 보전성이 확인되었다. 반면, 대도시 주변 지역은 낮은 서식지 보전성을 보였다. 둘째, 종구성 유사성은 고위도·고도 내륙 지역에서 기후변화 하에서도 비교적 안정적으로 유지되어 기후 피난처로서의 가능성을 보여주었으나, 남부 해안, 동부 해안 및 도서 지역에서는 현저한 감소가 예측되어 기후변화에 대한 취약성이 확인되었다. 셋째, BERI의 공간 분포는 탄소 배출량이 증가하고 미래 시점이 멀어질수록 전반적으로 감소하는 경향을 보였으며, 모든 기후변화 시나리오에서 지리산 국립공원은 BERI 0.6 이상을 유지하여 높은 생태적 회복력을 나타냈다.
본 연구는 국내 자료를 기반으로 BERI를 독자적으로 산출한 최초의 학술 연구로서, 쿤밍-몬트리올 세계 생물다양성 프레임워크(KM-GBF)의 Target 8 이행 평가에 과학적 근거를 제공한다. BERI가 높게 유지되는 핵심 지역(설악산, 지리산, 영남 산림)과 이들을 연결하는 산림 회랑에서의 BERI 감소 경향은 OECM의 전략적 배치 및 보전 우선지역 선정에 실질적인 정보를 제공한다. 다만, 본 연구는 포유류에 국한되어 있으며, SDM-InVEST 연계 파라미터의 불확실성과 GDM 모형 적합도의 검증이 추가적으로 필요하다. 향후 연구에서는 분류군을 확대하고, 토지이용 변화 시나리오를 결합하며, 모형 불확실성에 대한 민감도 분석을 수행하여 보다 포괄적인 생태계 회복력 평가 체계를 구축할 필요가 있다.
Acknowledgments
본 연구는 과학기술정보통신부의 재원으로 한국연구재단의 기초연구사업[NRF-2021R1C1C2012406]의 지원을 받아 수행되었습니다.
References
-
Alves-Pinto H, Geldmann J, Jonas H, Maioli V, Balmford A, Latawiec AE, Crouzeilles R, Strassburg B. 2021. Opportunities and challenges of other effective area-based conservation measures (oecms) for biodiversity conservation. Perspect Ecol Conserv 19(2): 115-120.
[https://doi.org/10.1016/j.pecon.2021.01.004]

-
Araújo MB, Alagador D, Cabeza M, Nogués‐Bravo D, Thuiller W. 2011. Climate change threatens european conservation areas. Ecol Lett 14(5): 484-492.
[https://doi.org/10.1111/j.1461-0248.2011.01610.x]
-
Barbet‐Massin M, Jetz W. 2015. The effect of range changes on the functional turnover, structure and diversity of bird assemblages under future climate scenarios. Global Change Biol 21(8): 2917-2928.
[https://doi.org/10.1111/gcb.12905]
-
Bellard C, Bertelsmeier C, Leadley P, Thuiller W, Courchamp F. 2012. Impacts of climate change on the future of biodiversity. Ecol Lett 15(4): 365-377.
[https://doi.org/10.1111/j.1461-0248.2011.01736.x]
-
Brodie JF, Deith MC, Burns P, Goetz S, Cunningham C, Hill JK, Reynolds G, Mohd-Azlan J. 2025. The contribution of other effective area-based conservation measures (oecms) to protecting global biodiversity. Nat Commun 16(1): 7886.
[https://doi.org/10.1038/s41467-025-63205-8]
-
Brodie JF, Gonzalez A, Mohd-Azlan J, Nelson CR, Tabor G, Vasudev D, Zeller KA, Fletcher RJ Jr. 2025. A well-connected earth: The science and conservation of organismal movement. Science 388(6745): eadn2225.
[https://doi.org/10.1126/science.adn2225]
-
Brodie JF, Mohd‐Azlan J, Schnell JK. 2016. How individual links affect network stability in a large‐scale, heterogeneous metacommunity. Ecology 97(7): 1658-1667.
[https://doi.org/10.1890/15-1613.1]
-
Cho YC, Seol J, Lim CH. 2024. Climate-induced distribution dynamics and niche adaptation of South Korean endemic plants across the Korean Peninsula. Sci Rep 14(1): 22253.
[https://doi.org/10.1038/s41598-024-73569-4]
-
Choi Y, Lim C-H, Chung HI, Kim Y, Cho HJ, Hwang J, Kraxner F, Biging GS, Lee W-K, Chon J. 2021. Forest management can mitigate negative impacts of climate and land-use change on plant biodiversity: Insights from the Republic of Korea. J Environ Manage 288: 112400.
[https://doi.org/10.1016/j.jenvman.2021.112400]
-
Choi Y, Lim C-H, Chung HI, Ryu J, Jeon SW. 2019. Novel index for bioclimatic zone-based biodiversity conservation strategies under climate change in northeast asia. Environ Res Lett 14(12): 124048.
[https://doi.org/10.1088/1748-9326/ab5237]
-
Diversity CoB. 2022. The kunming-montreal global biodiversity framework. Montreal, Canada: Secretariat of the Convention on Biological Diversity.
[https://doi.org/10.1017/ilm.2023.16]
-
Ferrier S, Harwood TD, Ware C, Hoskins AJ. 2020. A globally applicable indicator of the capacity of terrestrial ecosystems to retain biological diversity under climate change: The bioclimatic ecosystem resilience index. Ecol Indic 117: 106554.
[https://doi.org/10.1016/j.ecolind.2020.106554]
-
Fick SE, Hijmans RJ. 2017. Worldclim 2: New 1‐km spatial resolution climate surfaces for global land areas. Int J climatol 37(12): 4302-4315.
[https://doi.org/10.1002/joc.5086]
-
Garcia RA, Cabeza M, Rahbek C, Araújo MB. 2014. Multiple dimensions of climate change and their implications for biodiversity. Science 344(6183): 1247579.
[https://doi.org/10.1126/science.1247579]
-
Giakoumi S, Richardson AJ, Doxa A, Moro S, Andrello M, Hanson JO, Hermoso V, Mazor T, McGowan J, Kujala H. 2025. Advances in systematic conservation planning to meet global biodiversity goals. Trends Ecol Evol 40(4): 395-410.
[https://doi.org/10.1016/j.tree.2024.12.002]
-
Guerin GR, Williams KJ, Leitch E, Lowe AJ, Sparrow B. 2021. Using generalised dissimilarity modelling and targeted field surveys to gap‐fill an ecosystem surveillance network. J Appl Ecol 58(4): 766-776.
[https://doi.org/10.1111/1365-2664.13814]
-
Harwood T, Love J, Drielsma M, Brandon C, Ferrier S. 2022. Staying connected: Assessing the capacity of landscapes to retain biodiversity in a changing climate. Landscape Ecol 37(12): 3123-3139.
[https://doi.org/10.1007/s10980-022-01534-5]
-
Harwood T, Ware C, Hoskins A, Ferrier S, Bush A, Golebiewski M, Hill S, Ota N, Perry J, Purvis A. 2022. Beri v2: Bioclimatic ecosystem resilience index: 30s global time series. V1. CSIRO. Data Collection.
[https://doi.org/10.25919/437m-8b91]
-
Holling CS. 1973. Resilience and stability of ecological systems. International Institute for Applied Systems Analysis Laxenburg.
[https://doi.org/10.1017/9781009177856.038]
-
Jeong A, Kim M, Lee S. 2024. Analysis of priority conservation areas using habitat quality models and maxent models. Animals 14(11): 1680.
[https://doi.org/10.3390/ani14111680]
-
Keppel G, Mokany K, Wardell-Johnson GW, Phillips BL, Welbergen JA, Reside AE. 2015. The capacity of refugia for conservation planning under climate change. Front Ecol Environ 13(2): 106-112.
[https://doi.org/10.1890/140055]
-
Kim S-H, Yoo Y, Choi Y. 2026. Beyond expert opinion: A scalable, data-driven model for habitat quality assessment. Ecol Model 515: 111523.
[https://doi.org/10.1016/j.ecolmodel.2026.111523]
-
Kim T-S, Dhakal T, Kim S-H, Lee J-H, Kim S-J, Jang G-S. 2023. Examining village characteristics for forest management using self-and geographic self-organizing maps: A case from the baekdudaegan mountain range network in Korea. Ecol Indic 148: 110070.
[https://doi.org/10.1016/j.ecolind.2023.110070]
- Korea Meteorological Administration (KMA). 2026. High-resolution gridded meteorological analysis data service (500 m resolution). Korea Meteorological Administration API Hub; [accessed 2025 Aug 26]. https://apihub.kma.go.kr/urlRedirect.do?seqApi=971&seqApiSub=936&apiMov=1
-
Mokany K, Ware C, Woolley SN, Ferrier S, Fitzpatrick MC. 2022. A working guide to harnessing generalized dissimilarity modelling for biodiversity analysis and conservation assessment. Global Ecol Biogeogr 31(4): 802-821.
[https://doi.org/10.1111/geb.13459]
-
Mooney H, Larigauderie A, Cesario M, Elmquist T, Hoegh-Guldberg O, Lavorel S, Mace GM, Palmer M, Scholes R, Yahara T. 2009. Biodiversity, climate change, and ecosystem services. Curr Opin Environ Sustainability 1(1): 46-54.
[https://doi.org/10.1016/j.cosust.2009.07.006]
-
Pacifici M, Foden WB, Visconti P, Watson JE, Butchart SH, Kovacs KM, Scheffers BR, Hole DG, Martin TG, Akçakaya HR. 2015. Assessing species vulnerability to climate change. Nat Clim Change 5(3): 215-224.
[https://doi.org/10.1038/nclimate2448]
-
Park S, Park H, Im J, Yoo C, Rhee J, Lee B, Kwon C. 2019. Delineation of high resolution climate regions over the Korean Peninsula using machine learning approaches. PLoS ONE 14(10): e0223362.
[https://doi.org/10.1371/journal.pone.0223362]
-
Park S, Park H, Lee S. 2025. Potential habitat and priority conservation areas for endangered species in South Korea. Animals 15(8): 1158.
[https://doi.org/10.3390/ani15081158]
-
Pereira HM, Ferrier S, Walters M, Geller GN, Jongman RH, Scholes RJ, Bruford MW, Brummitt N, Butchart SH, Cardoso A. 2013. Essential biodiversity variables. Science 339(6117): 277-278.
[https://doi.org/10.1126/science.1229931]
-
Ramsay JO. 1988. Monotone regression splines in action. Stat Sci 3(4): 425-441.
[https://doi.org/10.1214/ss/1177012761]
-
Reside AE, Butt N, Adams VM. 2018. Adapting systematic conservation planning for climate change. Biodivers Conserv 27(1): 1-29.
[https://doi.org/10.1007/s10531-017-1442-5]
-
Santibáñez P, Zamora R, Franchi J, Montaner-Fernández D, Santibáñez F. 2025. Bioclimatic stress index: A tool to evaluate climate change impact on mediterranean arid ecosystems. J Arid Environ 229: 105376.
[https://doi.org/10.1016/j.jaridenv.2025.105376]
-
Staudinger MD, Carter SL, Cross MS, Dubois NS, Duffy JE, Enquist C, Griffis R, Hellmann JJ, Lawler JJ, O’Leary J. 2013. Biodiversity in a changing climate: A synthesis of current and projected trends in the us. Front Ecol Environ 11(9): 465-473.
[https://doi.org/10.1890/120272]
-
Urban MC. 2015. Accelerating extinction risk from climate change. Science 348(6234): 571-573.
[https://doi.org/10.1126/science.aaa4984]
-
Urban MC, Bocedi G, Hendry AP, Mihoub J-B, Pe’er G, Singer A, Bridle JR, Crozier LG, De Meester L, Godsoe W. 2016. Improving the forecast for biodiversity under climate change. Science 353(6304): aad8466.
[https://doi.org/10.1126/science.aad8466]
-
van der Mescht L, Warburton EM, Khokhlova IS, Stanko M, Vinarski MV, Korallo-Vinarskaya NP, Krasnov BR. 2018. Biogeography of parasite abundance: latitudinal gradient and distance decay of similarity in the abundance of fleas and mites, parasitic on small mammals in the Palearctic, at three spatial scales. Int J Parasitol 48(11): 857-866.
[https://doi.org/10.1016/j.ijpara.2018.04.005]
-
Walker B, Salt D. 2012. Resilience practice: Building capacity to absorb disturbance and maintain function. Island Press.
[https://doi.org/10.1016/j.ijpara.2018.04.005]
-
Williams SH, Scriven SA, Burslem DF, Hill JK, Reynolds G, Agama AL, Kugan F, Maycock CR, Khoo E, Hastie AY. 2020. Incorporating connectivity into conservation planning for the optimal representation of multiple species and ecosystem services. Conserv Biol 34(4): 934-942.
[https://doi.org/10.1111/cobi.13450]
-
Wilson MFJ, O’Connell B, Brown C, Guinan JC, Grehan AJ. 2007. Multiscale terrain analysis of multibeam bathymetry data for habitat mapping on the continental slope. Mar Geod 30(1-2): 3-35.
[https://doi.org/10.1080/01490410701295962]
-
Wu L, Sun C, Fan F. 2021. Estimating the characteristic spatiotemporal variation in habitat quality using the invest model—A case study from Guangdong-Hong Kong-Macao Greater Bay Area. Remote Sens 13(5): 1008.
[https://doi.org/10.1080/01490410701295962]
Appendix
부록
List of species used in the analysis
Threat and sensitivity parameters of the InVEST habitat quality model for Level II land cover classes, adopted from Kim et al. (2026)
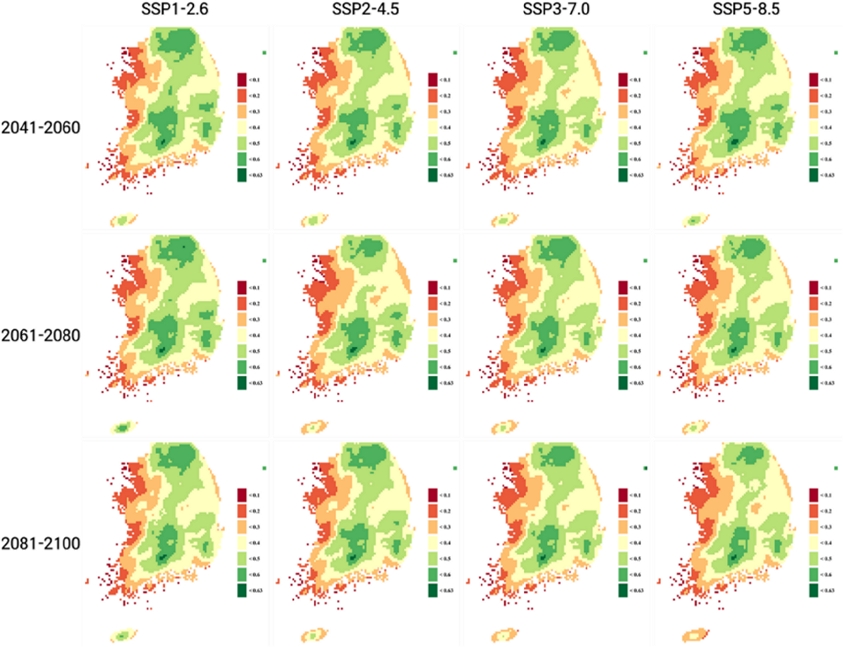
Projected spatial patterns of the Bioclimatic ecosystem resilience index (BERI) under SSP1-2.6, SSP2-4.5, SSP3-7.0, and SSP5-8.5 scenarios for 2041–2060, 2061–2080, and 2081–2100